사철쑥에서 분리한 Scopoletin의 예쁜꼬마선충 내의 스트레스 억제 효과
Abstract
In the search for anti-aging compounds in native Korean plants, scopoletin isolated from Artemisia capillaris Thunb. (Compositae) was shown in experiments using the Caenorhabditis elegans model system to reduce reactive oxygen species levels and enhance resistance to oxidative and heat shock stress. In addition, in experiments testing stress resistance using the related transformed strains CF1553 and CL2070, it showed that scopoletin-treated C. elegans produced proteins that resist oxidative and heat shock stress. Scopoletin showed a significant life-extending effect in a concentration-dependent manner.
Keywords:
Artemisia capillaris Thunb., Scopoletin, Caenorhabditis elegans, Oxidative stress, Heat shock stress활성산소종(ROS)의 과도한 생성과 방어 항산화 시스템의 손상은 산화 스트레스(oxidative stress)라는 상태를 초래한다.1) 산화 스트레스를 일으키는 자유 라디칼의 주요 원천은 미토콘드리아 호흡으로 과도하게 생성된 ROS가 DNA를 포함한 세포 내 생체분자에 미치는 해로운 영향은 잘 알려진 현상으로, 미토콘드리아 기능을 방해하고 세포 손상과 사멸을 초래하며, 이로 인해 다양한 질병이 발생할 수 있다.1) ROS가 낮은 수준으로 유지될 때는 세포 내 신호 전달 경로에서 유리한 생리학적 역할을 하지만, 과도하게 생성되면 세포와 조직 손상의 주요 원인 중 하나가 된다. 내인성 ROS는 산소 대사의 부산물로 생성되지만, 외인성 산화 스트레스는 이온화 방사선이나 X선, 자외선, 오염물질, 담배 연기, 중금속, 특정 약물 등 환경적 스트레스 요인에 의해 유발될 수 있다.1-3) 알츠하이머병(AD), 파킨슨병(PD), 근위축성 측삭경화증(ALS)과 같은 신경퇴행성 질환은 노화와 관련된 질환으로, 자유 라디칼 생성과 연관된 미토콘드리아 구조와 기능의 변화가 특징이다. 만성 질환의 발병 기전의 근간에도 산화 스트레스 상태가 관여되어 있다.3)
기후 변화로 인해 전 세계적으로 기온이 상승하면서 환경과 인간 건강에 대한 심각한 위협이 가중되고 있다. 특히 지속되는 고온 현상과 극심한 폭염은 신체적, 정신적 만성 스트레스와 열 스트레스(heat stress)를 유발한다. 이는 심혈관 기능 부전, 신경 손상, 신부전 등을 일으키며 사망에 이르게 할 수도 있다. 이에 대응하여 우리 몸은 열, 화학 독소, 자외선, 산화제와 같은 유해 요인으로부터 세포나 생명을 유기하기 위한 열충격 반응(heat shock response)을 일으킨다. 이 반응은 분자 샤페론(chaperone)으로 알려진 열충격 단백질(HSP100, HSP90, HSP70, HSP60, 소형 HSP 등)의 발현을 촉발한다. 열충격 단백질(HSPs)은 단백질 접힘(protein folding), 잘못 접힌 단백질(misfolded proteins)의 제거, 세포자멸사(apoptosis) 조절, 세포 신호 전달 등 필수적인 생명 활동에 관여하여 세포의 열 내성을 높이고 인체를 보호한다.4-7)
인체 내에 산화 스트레스 및 열충격 스트레스에 대응하는 효율적인 제어 시스템이 존재함에도 불구하고, 과도하게 생성되는 ROS나 열충격에 대해 효과적으로 방어하기 위해서는 보다 안전하고 유효한 스트레스 억제 물질의 지속적인 발굴이 요구된다. 이러한 측면에서 볼 때 천연물은 우수한 연구 소재가 될 수 있다.8,9)
사철쑥(Artemisia capillaris Thunb., Compositae)는 아시아에서 자생하는 낙엽관목으로 지상부를 인진호(茵蔯蒿)라 하여 간질환, 진통, 해열의 목적으로 사용되어 왔다.10) 사철쑥의 함유성분으로 ursolic acid, scopoletin, scopoline 등과 flavonoid 물질들이 보고되어 있고, 이 식물의 항산화, 항염증, 항균, 항암 등의 효과가 보고되어 있다.10-13) 본 연구는 사철쑥 methanol 추출물을 계통분획하여 각 분획물에 대해 수명연장 효능을 확인하는 과정에서 TLC상에서 뚜렷한 spot를 보인 methylene chloride 분획에 대하여 예쁜꼬마선충(Caenorhabditis elegans)을 이용한 산화 스트레스(oxidative stress)와 열충격(heat shock stress)에 대한 저항 효능을 확인하고, 이와 관련된 스트레스 저항 단백질 발현 여부를 선충의 형질전환 mutant인 CF1553과 CL2070을 이용하여 실험한 결과 몇가지 지견을 얻었기에 이를 보고하고자 한다.
재료 및 방법
실험재료 – 실험에 사용한 사철쑥은 시중에서 구입하여 김대근 교수(우석대학교)가 검증한 후에 실험에 사용하였으며, 표준품은 우석대학교 약학과 생약표본실에 보관하고 있다(WS-18-017, WS-23-003).
추출 및 분리 – 잘 건조된 사철쑥 1 kg을 methanol로 50℃에서 6시간씩 3회 추출하였다. 이 추출액을 50℃ 수욕상에서 감압농축하여 methanol 엑스를 얻었다(29.5 g). 이 methanol 추출물을 증류수로 현탁하여 n-hexane (5.2 g), methylene chloride (3.6 g), ethyl acetate (3.5 g) 및 n-butanol (3.2 g)로 분획하여 각각의 분획물을 확보하였다. TLC를 통한 각 분획의 함유 물질의 패턴을 검색한 결과 UV 365 nm에서 강한 형광을 나타낸 methylene chloride 분획을 대상으로 물질 분리를 시도하였다. Methylene chloride-methanol (7:3) 혼합용매를 이동상으로 Sephadex LH-20 column chromatography를 실시하여 TLC 양상에 따라 5개의 소분획(MC1-MC5)으로 나누었다. 그 중 소분획 MC4를 이동상으로 CHCl3-EtOAc (3.5:1) 혼합용매로 Lobar silica gel column으로 정제하여 화합물 1을 얻었다.
Compound 1 (scopoletin) : 1H-NMR (600 MHz, DMSO-d6) δ: 6.26 (1H, d, J=9.6 MHz, H-3), 7.95 (1H, d, J=9.6 MHz, H-4), 7.25 (1H, s, H-5), 6.81 (1H, s, H-8), 3.85 (3H, s, C6-OMe). 13C-NMR (150 MHz, DMSO-d6) δ: 161.2 (C-2), 112.1 (C-3), 145.0 (C-4), 110.1 (C-5), 145.8 (C-6), 151.8 (C-7), 103.2 (C-8), 111.0 (C-4'), 150.0 (C-8'), 56.5 (C6-OMe).
시약 및 기기 – 화합물의 구조분석을 위해 Jeol JMN-EX 400 spectrometer (Japan)를 이용하여 NMR 자료를 확보하였다. 추출 및 분획용 시약과 TLC 및 column용 시약은 1급 용매를 사용하였다. Column chromatography용 silica gel은 Kiesel gel 60 (Art. 1.07734, 230-400 mesh, Merck)을, molecular sieve column chromatography용 packing material은 Sephadex LH-20 (GE Healthcare, Sweden)을 사용하였고, Lobar-A Lichroprep Si 60 column을 이용하여 물질을 정제하였다. TLC plate는 Kiesel gel 60 F254(Art. 1.07752, Merck, USA)을 사용하였다. 발색시약은 10% H2SO4 (in EtOH) 시액을 사용하였으며, UV의 검색은 254와 365 nm를 병행하였다.
예쁜꼬마선충(Caenorhabditis elegans) 배양 – 예쁜꼬마선충은 대장균 (E. coli OP50)를 도말한 Nematode Growth Medium (NGM) agar plate를 이용하여 20℃에서 배양하였다. 시료는 0.1% (v/v) 디메틸설폭사이드(DMSO)에 용해하여 NGM plate에 첨가하여 사용하였다.14)
선충 세포 내 활성 산소종(ROS) 분석 – 선충 세포 내의 ROS의 양은 2',7'-dichlorodihydro fluorescein diacetate (H2DCF-DA)를 사용하여 측정하였고, scopoletin을 농도별로 첨가한 plate에 성장 단계가 동일한 선충을 배양하여 성체가 된 후 4일째되는 선충을 50 μM juglone을 함유한 M9 buffer에 넣고 2시간 노출시킨 후 M9 buffer가 50 μL씩 담긴 96 well plate에 3마리씩 옮기고, 100 μM의 H2DCF-DA 50 μL를 첨가한 뒤 흡광도를 여기 485 nm, 방출 535 nm에서 각각 측정하였다.15)
산화적 스트레스 저항성 측정 – 성체가 된 후 7일째인 선충을 산화적 스트레스를 유발제로 250 μM juglone이 함유된 M9 buffer를 넣은 96 well plate에 분주하고 시간 별로 생존율을 확인하였다.16)
온도 스트레스 저항성 평가 – 성장단계가 동일한 선충을 scopoletin을 농도별로 처리한 NGM plate에서 배양하였다. 온도 스트레스에 의한 내성을 분석하기 위해 선충을 성체가 된 후 4일째에 신선한 배지로 옮기고 36℃에서 배양하여 시간 별로 생존율을 24시간 동안 측정하였다.17)
형질 전환 선충 내 SOD-3::GFP 형광 측정 – 형질전환된 SOD-3::GFP 유전자를 포함하는 선충(CF1553)을 시료가 농도별로 첨가된 배지에서 배양하였다. 성체 3일 차에 선충을 1% sodium azide로 마취한 후, 형광 실체 현미경(Olympus, Japan)으로 GFP 발현을 관찰하였다. 발현 강도는 현미경으로 촬영한 이미지를 기반으로 ImageJ 소프트웨어를 사용하여 정량 분석하였다.18)
형질 전환 선충 내 HSP-16.2::GFP 형광 측정 – 형질 전환된 선충 HSP-16.2::GFP를 포함한 CL2070를 시료를 농도별로 처리한 배지에서 배양하였다. 성체가 된 후 4일째에 사용하였으며, 현미경 관찰 전 CL2070는 2시간 동안 36℃에서 열 스트레스를 가하고 4시간 동안 20℃에서 회복시켰다. 선충을 sodium azide (1%)로 마취시킨 후 형광 실체 현미경(Olympus, Japan)으로 GFP 발현을 관찰하였으며, ImageJ 소프트웨어를 이용하여 발현강도를 정량, 분석하였다.18)
수명연장효능평가 – 선충의 수명연장분석은 20℃에서 독립적으로 3회 실행하였으며, 성장단계를 일치시키기 위해 NGM plate로부터 알을 따로 분리하여 시료를 첨가한 각각의 plate에 옮겨 배양하였고 매일 생존여부를 확인하였다. 생존 여부의 확인은 선충을 platinum wire의 끝으로 자극했을 때 반응이 없는 경우를 사망상태로 간주하였고 독립적으로 3회 실행하였다.19)
통계 분석 – 통계 자료의 값은 평균값 ± 표준오차(mean ± S.E.M.)로 나타냈으며, 그룹 간의 통계적 유의성은 ANOVA를 통해 검정하였다. 선충의 생존율 곡선은 Log-rank test를 이용하여 분석하였으며, p값이 *p<0.05, **p<0.01, ***p<0.001일 때 유의성이 있는 것으로 간주하였다.
결과
화합물의 구조 확인 – 화합물 1은 흰색의 무정형 물질로 TLC 상에서 UV 254 nm에서 파란 형광으로 관찰되어 coumarin계열 화합물로 추정되었다. 1H-NMR spectrum의 aromatic 영역 또는 olefinic 영역에서 4개의 signal이 관찰되었는데 δ 7.95 (1H, d, J=9.6 MHz, H-4)과 6.26 (1H, d, J=9.6 Hz, H-3)에서 서로 coupling하는 2개의 peak가 확인되었고, δ 7.25 (1H, s, H-5)과 6.81 (1H, s, H-8)에서 2개의 singlet peak가 확인되었으며, 그 외에 δ 3.85 (3H, s, O-CH3)에서 methoxy로 추정되는 peak가 관찰되었다. 13C-NMR spectrum에서는 δ 161.2 (C-2)에서 1개의 carbonyl carbon이 확인되었고 그 외에 8개의 carbon signal과 1개의 methoxy로 추정되는 peak가 δ 56.5 (C6-OMe)에서 관찰되었다. 이상의 자료를 통하여 화합물 1은 사철쑥 성분 중의 하나로 보고된 scopoletin으로 추정하였으며, 기존문헌의20) 자료와 비교하여 구조를 확인·동정하였다(Fig. 1).
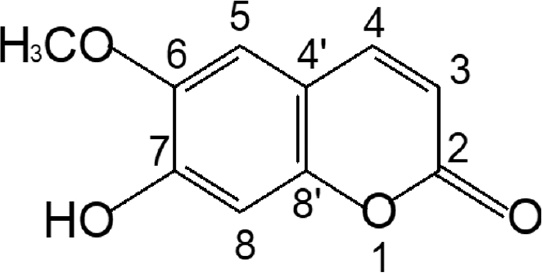
Structure of scopoletin isolated from A. capillaris.
ROS 축적 감소 효과 – Scopoletin의 선충 내 ROS 축적 감소 효능은 선충 내부의 활성 산소종과 H2DCF-DA을 반응시켜 형광을 측정하였으며, 활성 산소종 형광의 감소폭은 대조군과 비교하여 scopoletin 25 μM 처리군에서 약 16.7%를 감소시키는 것으로 나타났다(***p<0.001, Fig. 2).
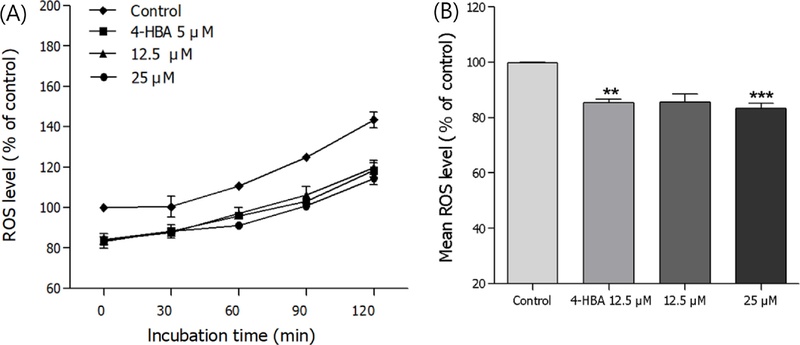
Effects of scopoletin from A. capillaris on the intracellular ROS levels of wild-type N2 nematodes. Intracellular ROS accumulation was examined in a microplate fluorescence reader at 535 nm (emission) and 485 nm (excitation). (A) Plates were read for 120 min. (B) The average percentages of intracellular ROS accumulation were presented. Differences compared with the control were considered significant at **p<0.01 and ***p<0.001 by the one-way ANOVA. 4-HBA (4-hydroxybenzoic acid): positive control 12.5 μM.
산화적 스트레스 저항성 증가 효능 – 선충의 산화 상태를 유도하기 위하여 96 well plate에 250 μM juglone이 첨가된 M9 buffer로 배양한 대조군은 최대 생존시간이 21시간이었으나, 동일한 조건에서 scopoletin 25 μM을 처리하였을 경우 생존시간이 26시간으로 증가하였다. 대조군의 평균 생존시간은 11.1±1.1시간 이었으나, scopoletin 25 μM 처리군은 45.7% (16.2±1.2.시간)로 평균 생존 시간을 증가시켰다(**p<0.01, Fig. 3A, Table I).
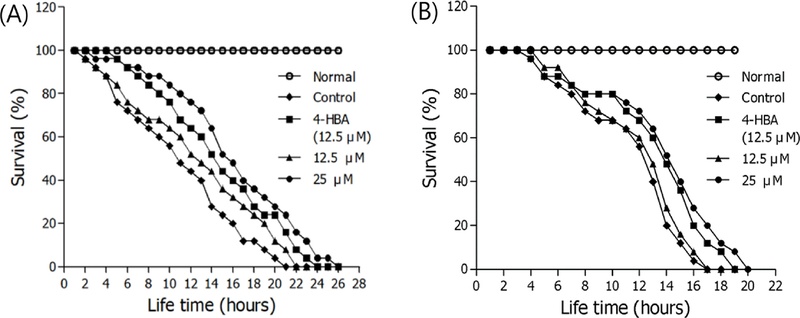
Effects of scopoletin from A. capillaris on the stress endurance of N2 worms. (A) For the oxidative stress assays, worms were transferred to 96-well plate containing 250 μM juglone culture, and then they were scored for survival capacity. (B) To assess heat endurance, worms were incubated at 36℃ and then their survival capacity was tested. Statistical distinction between the curves was analyzed by the log-rank test. 4-HBA (4-hydroxybenzoic acid): positive control 12.5 μM.

Effects of scopoletin from A. capillaris on the stress endurance of C. elegans
온도 스트레스 저항성 증가 효능 – 선충에게 열을 가하여 36℃에서 대조군은 3시간 만에 죽기 시작하여 16시간에 모두 사멸한 반면 scopoletin 25 μM 처리군은 19시간으로 생존시간이 향상되었다. 대조군의 평균 생존시간이 10.3 ± 0.7시간이었으나 scopoletin 25 μM 처리군은 13.0 ± 0.7시간으로 25.6% 평균 생존 시간을 증가시켰다(**p<0.01, Fig. 3B, Table I).
형질 전환 선충 내 SOD-3의 발현 증가 효과 – Scopoletin의 선충 내의 산화 스트레스에 대하여 이를 극복하기 위한 저항 단백질의 생성 여부를 판별하기 위해 SOD-3을 포함하고 있는 C. elegans의 mutant인 CF1553을 사용하였다. CF1553에 scopoletin 12.5 μM과 25 μM 투여군에서 대조군에 비교하여 각각 4.0% (*p<0.05), 7.55% (**p<0.01)의 SOD-3::GFP의 발현 증가효과를 보여 주었다(Fig. 4).
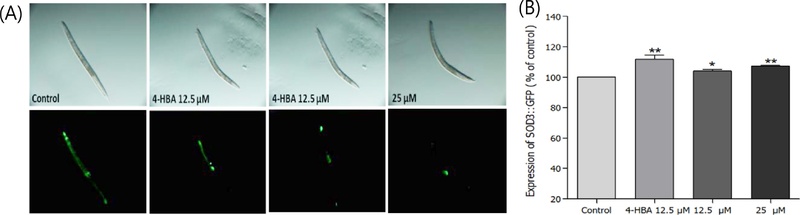
Effects of scopoletin from A. capillaris on the expression of SOD-3 was determined using transgenic nematodes. (a) Images of SOD-3::GFP expression of CF1553 worm in the presence or absence of scopoletin. (b) The mean GFP intensity of mutant was represented as mean ± S.E.M. of values from 70 to 80 organisms per each experiment. Differences compared with the control were considered significant at *p < 0.05 and **p<0.01 by one-way ANOVA. 4-HBA (4-hydroxybenzoic acid): positive control 12.5 μM.
형질 전환 선충 내 HSP-16.2의 발현 증가 효과 – 열 스트레스 조건 하에서의 내성 반응 유전자의 형광 발현량 증가 여부를 확인하기 위해, HSP-16.2(CL2070)를 포함한 형질 전환 선충을 사용하였다. 선충을 2시간 동안 36℃에서 열을 가하고 20℃에서 4시간 동안 회복시킨 후 HSP-16.2::GFP 형광을 측정한 결과, scopoletin 12.5 μM과 25 μM 투여군에서 대조군과 비교하여 3.3% (**p<0.01), 9.8% (***p<0.001)의 HSP-16.2::GFP 증가효과를 보여 주었다 (Fig. 5).
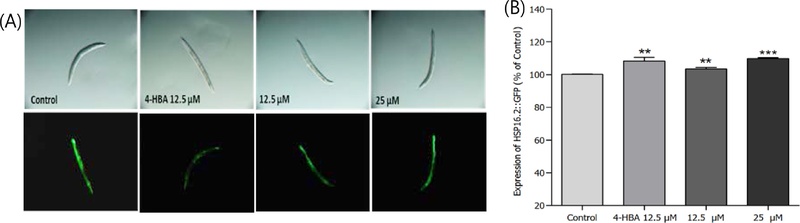
Effects of scopoletin from A. capillaris on the expression of HSP-16.2 in C. elegans. (A) Images of 16.2::GFP expressions of CL2070 worms were taken from the corresponding mutants grown in the presence or absence of scopoletin. (B) The mean GFP intensity of the CL2070 mutant was expressed as the mean ± S.E.M. Differences compared to the control were considered significant at **p<0.01 and ***p<0.001 by one-way ANOVA. 4-HBA (4-hydroxybenzoic acid): positive control 12.5 μM.
C. elegans 수명 연장효능 – Scopoletin의 수명 연장 효과는 야생형 N2 선충에서 평가되었으며, 농도 의존적인 수명연장 효과를 나타냈다. Scopoletin 처리 선충의 평균 수명은 12.5 μM (9.9 ± 0.4일)과 25 μM (11.8 ± 0.5일)에서 각각 10.1% (p<0.05)와 23.8% (p<0.001) 수명 연장 효과를 보여주었다(Fig. 6, Table II).
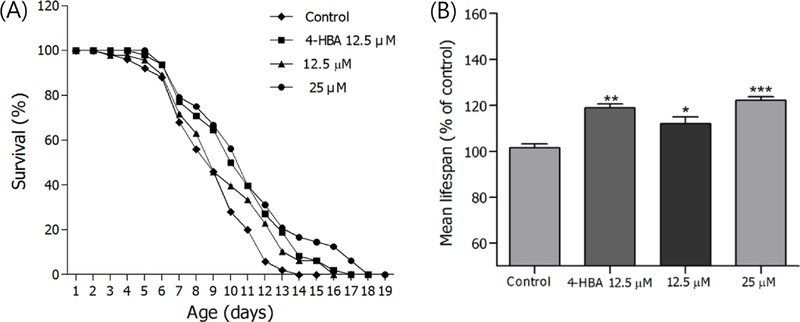
Effects of scopoletin from A. capillaris on the lifespan of wild-type N2 nematodes. (A) The mortality of each group was determined by daily counting of surviving and dead worms. (B) The mean lifespan of the N2 worms was calculated from the survival curves. Statistical difference between the curves was analyzed by log-rank test. Error bars represent the standard error of mean (S.E.M.). Differences compared to the control were considered significant at *p<0.05, **p<0.01 and ***p<0.001 by one-way ANOVA. 4-HBA (4-hydroxybenzoic acid): positive control 12.5 μM.
Effects of scopoletin from A. capillaris on the lifespan of C. elegans
고찰
예쁜꼬마선충(C. elegans)은 약 1-2 mm 크기를 가진 투명한 선충으로 생물학 및 의학 연구 등에서 기초적인 노화 관련 연구를 비롯한 질병, 유전공학 등에 널리 쓰이는 생물 모델이다. 짧은 수명과 빠른 번식의 특징은 노화 연구를 가능하게 하였고, 완전히 규명된 유전자 지도는 인간 유전자와 60-80%가 유사하게 나타났으며, 이러한 특징은 유전자 기능 분석 연구를 가능하게 하였다. 또한, 질병에 따른 형질 전환된 돌연변이들을 개발하여 질병의 기전을 연구하고 치료제 개발의 검색 등에 유용하게 이용될 수 있는 장점을 가지고 있다.21) 산화 스트레스는 체내 활성산소의 생성량과 이를 제거하는 항산화 방어 체계 사이의 균형이 깨지면서 세포와 조직이 손상되는 상태이다. 적절한 수준의 활성산소는 세포 신호 전달 및 면역 작용에 필수적이지만, 과도하게 축적되면 세포 구성 요소를 공격하게 된다.1,2) 적절한 수준의 열충격은 세포의 자가 방어 체계를 깨워 오히려 수명을 늘리는 스트레스 응답 효과를 나타낼 수 있지만, 열충격이 가해질 때 세포가 겪는 스트레스는 노화 및 수명에 영향을 미칠 수 있다.3,5)
미토콘드리아는 세포 내 이중층으로 둘러싸인 소기관으로, 보통 세포 내에서 주요 에너지 생산 장소로 알려져 있다. 포도당이 피루브산으로 대사되면 미토콘드리아로 들어가 TCA 회로에 들어가고 몇 가지 과정을 거쳐 ATP 펌프를 통해 많은 양의 ATP를 생산한다. 이 과정에서 일부 전자가 산소로 누출되어 초과산화물 음이온(O2−), 과산화수소(H2O2) 및 기타 산화 생성물인 ROS를 생성하게 된다. 필요 이상의 ROS는 catalase, SOD와 같은 항산화 효소가 분해하고 전환시켜 ROS 축적을 줄인다. 그러나 과도한 ROS는 산화 스트레스를 일으키고 DNA, RNA, 단백질 같은 세포 구성 요소에 손상을 일으켜 각종 질병의 원인이 되므로 과도한 ROS는 신속히 제거할 필요가 있다.22) 열 스트레스는 생물체의 생리적 항상성을 위협하는 보편적이며 불가피한 환경적 요인이다. 열충격 단백질(Heat Shock Proteins, HSPs)은 세포 내 단백질의 올바른 구조적 접힘(protein folding)을 유도하고 단백질 항상성(proteostasis,)을 유지하는 핵심적인 분자 샤페론으로 작용한다. 열충격 반응은 열 스트레스 및 산화 스트레스를 포함한 다양한 단백질 독성(proteotoxic) 환경에서 손상된 세포질 단백질의 재접힘(refolding)을 촉진하고 변성 단백질의 응집을 방지함으로써 세포의 생존력을 증대시킨다.23)
본 연구에서는 C. elegans를 이용하여 사철쑥에서 분리한 scopoletin의 산화 스트레스 및 열충격 스트레스 관련 실험을 실시하였다. Scopoletin은 산화 스트레스를 야기하는 C. elegans 체내의 ROS 축적양을 유의성 있게 억제하는 효능을 보여 주었으며, juglone으로 유도한 산화 스트레스 연구에서는 대조군에 비해 25 μM 농도에서 생존율을 45.7% 증가시켜 산화 스트레스를 크게 억제하는 효능을 보여 주었다. 산화 스트레스에 저항하는 저항 단백질 발현여부를 확인하는 연구에서는 C. elegans mutant인 CF1553 (GFP-fused transgenic strain CF1553)을 이용하였는데, 25 μM 농도에서 mutant 내의 형광이 7.5% 증가되었고, mutant CL2070을 이용한 열충격 스트레스 저항 단백질 발현여부는 scopoletin 25 μM 농도에서 9.8%의 형광이 증가됨이 확인되어 산화 및 열충격 스트레스에 저항하기 위한 단백질이 상당량 생성되었음을 확인할 수 있었다.24) 또한, scopoletin은 C. elegans에 대해 농도 의존적으로 유의성 있는 수명연장 효과를 보여 주었다. 이러한 결과는 scopoletin의 항산화 효능이나 폐 섬유아세포를 이용한 연구에서 세포의 항노화 효과가 있음을 보고한 연구와 상응하는 결과를 보여주고 있다.25,26) 본 연구는 추후에 scopoletin의 스트레스 억제 활성을 비롯하여 이와 관련된 수명연장 등에 대한 보다 진전된 기전연구가 필요할 것으로 사료된다.
결론
Scopoletin은 C. elegans 내의 ROS를 농도 의존적으로 감소시켰고, 산화와 열충격 스트레스 조건에서도 C. elegans의 생존율을 증가시켰다. C. elegans의 mutant인 CF1553과 CL2070에 산화 스트레스를 가한 후 scopoletin을 처리한 선충의 형광 발현율이 크게 상승되어 산화 및 열충격 스트레스에 저항할 수 있는 단백질의 증가가 확인되었다. 또한 농도의존적으로 C. elegans의 수명연장효과를 보여주었다. 이러한 결과로 볼 때 scopoletin은 산화와 열충격 스트레스 억제 및 수명연장과 관련된 질병의 예방 및 치료에 도움이 되는 자원이 될 수 있을 것으로 사료된다.
References
-
Kowalczyk, P., Sulejczak, D., Kleczkowska, P., Bukowska-Ośko, I., Kucia, M., Popiel, M., Wietrak, E., Kramkowski, K., Wrzosek, K. and Kaczyńska, K. (2021) Mitochondrial oxidative stress-A causative factor and therapeutic target in many diseases. Int. J. Mol. Sci. 22: 3384.
[https://doi.org/10.3390/ijms222413384]

-
Dhapola, R., Beura, S. K., Sharma, P., Singh, S. K. and HariKrishnaReddy, D. (2024) Oxidative stress in Alzheimer's disease: current knowledge of signaling pathways and therapeutics. Mol. Biol. Rep. 51: 48.
[https://doi.org/10.1007/s11033-023-09021-z]
-
Shaito, A., Aramouni, K., Assaf, R., Parenti, A., Orekhov, A., Yazbi, A. E., Pintus, G. and Eid, A. H. (2022) Oxidative stress-induced endothelial dysfunction in cardiovascular diseases. Front. Biosci. (Landmark Ed) 27: 105.
[https://doi.org/10.31083/j.fbl2703105]
-
Ahmed, S., Kovács, D., Kovács, M., Kosztelnik, M., Hotzi, B., Sigmond, T., Saskői, É., Vincze, V. V,, Erdélyi, V., Deák, V., Stiller, I., Vellai, T. and Barna, (2026) Heat shock factor-1 alleviates ER-stress in Caenorhabditis elegans. J. Sci Rep. 16: 9928.
[https://doi.org/10.1038/s41598-026-43060-3]
-
Chen, Y., Jiang, W., Liu, X., Du, Y., Liu, L., Ordovas, J. M., Lai, C. Q. and Shen, L. (2020) Curcumin supplementation improves heat-stress-induced cardiac injury of mice: physiological and molecular mechanisms. J. Nutr. Biochem. 78: 108331.
[https://doi.org/10.1016/j.jnutbio.2019.108331]
-
Singh, M. K., Shin, Y., Ju, S., Han, S., Choe, W., Yoon, K. S., Kim, S. S. and Kang, I. (2024) Heat shock response and heat shock proteins: current understanding and future opportunities in human diseases. Int. J. Mo.l Sci. 25: 4209.
[https://doi.org/10.3390/ijms25084209]
-
Smith, R. S. and Mendillo, M. L. (2026) Heat shock transcription factors in development and disease. Dis. Model. Mech. 19: dmm052700.
[https://doi.org/10.1242/dmm.052700]
-
Sahoo, B. M., Banik, B. K., Borah, P. and Jain, A. (2022) Reactive oxygen species (ROS): Key components in cancer therapies. Anticancer Agents Med. Chem. 22: 215-222.
[https://doi.org/10.2174/1871520621666210608095512]
-
Lourenço, S. C., Moldão-Martins, M. and Alves, V. D. (2019) Antioxidants of natural plant origins: from sources to food industry applications. Molecules 24: 4132.
[https://doi.org/10.3390/molecules24224132]
-
Lee, H. E., Yang, G., Choi, J. S. and Lee, J. Y. (2017) Suppression of primary splenocyte proliferation by Artemisia capillaris and Its components. Toxicol. Res. 33: 283-290.
[https://doi.org/10.5487/TR.2017.33.4.283]
-
Hong, J. H. and Lee, I. S. (2008) Effects of Artemisia capillaris ethyl acetate fraction on oxidative stress and antioxidant enzyme in high-fat diet induced obese mice. Chemico-Biological Interactions 179: 88-93.
[https://doi.org/10.1016/j.cbi.2008.12.002]
-
Jang, S. I., Kim, Y. J., Lee, W. ,Y., Kwak, K. C., Baek, S. H., Kwak, G. B., Yun, Y. G., Kwon, T. O., Chung, H. T. and Chai, K. Y. (2005) Scoparone from Artemisia capillaris inhibits the release of inflammatory mediators in RAW 264,7 cells upon stimulation cells by interferon-y plus LPS. Arch. Pharm. Res. 28: 203-208.
[https://doi.org/10.1007/BF02977716]
-
Kim, Y. S., Bahn, K. N., Hah, C. K., Gang, H. I. and Ha, Y. L. (2008) Inhibition of 7,12-Dimethylbenz[a]anthracene-Induced Mouse Skin Carcinogenesis by Artemisia capillaris. J. Food Sci. 73: T16-20.
[https://doi.org/10.1111/j.1750-3841.2007.00585.x]
-
Roux, A. E., Langhans, K., Huynh, W. and Kenyon, C. (2016) Reversible age-related phenotypes induced during larval quiescence in C. elegans. Cell Metab. 23: 1113-1126.
[https://doi.org/10.1016/j.cmet.2016.05.024]
-
Hernández-Cruz, E. Y., Eugenio-Pérez, D., Ramírez-Magaña, K. J. and Pedraza-Chaverri, J. (2023) Effects of vegetal extracts and metabolites against oxidative stress and associated diseases: Studies in Caenorhabditis elegans. ACS Omega 8: 8936-8959.
[https://doi.org/10.1021/acsomega.2c07025]
-
Ahmad, T. and Suzuki, Y. J. (2019) Juglone in oxidative stress and cell signaling. Antioxidants (Basel) 8: 91.
[https://doi.org/10.3390/antiox8040091]
-
Xu, F., L,i R., von Gromoff, E. D., Drepper, F., Knapp, B., Warscheid, B., Baumeister, R. and Qi, W. (2023) Reprogramming of the transcriptome after heat stress mediates heat hormesis in Caenorhabditis elegans. Nat. Commun. 14: 4176.
[https://doi.org/10.1038/s41467-023-39882-8]
-
Motta, H. S., Roos, D., Tabarelli, G., Rodrigues, O. E. D., Ávila, D. and Quines, C. B. (2020) Activation of SOD-3 is involved in the antioxidant effect of a new class of beta-aryl-chalcogenium azide compounds in Caenorhabditis elegans. An. Acad. Bras. Cienc. 92(suppl 2): e20181147.
[https://doi.org/10.1590/0001-3765202020181147]
-
Bonuccelli, G., Brooks, D. R., Shepherd, S., Sotgia, F. and Lisanti, M. P. (2023) Antibiotics that target mitochondria extend lifespan in C. elegans. Aging (Albany NY) 15: 11764-11781.
[https://doi.org/10.18632/aging.205229]
-
Wua, Q. i., Zoub, L., Yanga, X. W. and Fu, D. X. (2009) Novel sesquiterpene and coumarin constituents from the whole herbs of Crossostephium chinense. Journal of Asian Natural Products Research 11: 85-90.
[https://doi.org/10.1080/10286020802435703]
-
Lin, Y., Lin, C., Cao, Y. and Chen, Y. (2023) Caenorhabditis elegans as an in vivo model for the identification of natural antioxidants with anti-aging actions. Biomed. Pharmacother. 167: 115594.
[https://doi.org/10.1016/j.biopha.2023.115594]
-
Xu, X., Pang, Y. and Fan, X. (2025) Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 10: 190.
[https://doi.org/10.1038/s41392-025-02253-4]
-
Ghadanian, T., Iye,r S., Lazzari, L. and Vera, M. (2025) Selective translation under heat shock: Integrating HSP70 mRNA regulation with cellular stress responses in yeast and mammals. Mol. Biol. Cell 36: re2.
[https://doi.org/10.1091/mbc.E24-12-0564]
-
Waters, J. C. (2009) Accuracy and precision in quantitative fluorescence microscopy. J. Cell Biol. 185: 1135-1148.
[https://doi.org/10.1083/jcb.200903097]
-
Karunarathna, B. S. W., Gajasinghe, G. M. S. T., Wanni-arachchi, J. D., Govender, K. K. and Seneweera, S. (2024) A DFT analysis of the antioxidant capacity of scopolin and scopoletin. J. Mol. Model 30: 424.
[https://doi.org/10.1007/s00894-024-06192-9]
-
Nam, H. and Kim, M. M. (2015) Scopoletin has a potential activity for anti-aging via autophagy in human lung fibroblasts. Phytomedicine 22: 362-368.
[https://doi.org/10.1016/j.phymed.2015.01.004]